IF:18.1《NC》上海交通大学吴蓉团队:仿生多孔金属氨基酸纳米酶通过抗氧化和促感化胞增作用实现多途径动脉粥样硬化治疗
专栏:学术前沿
发布日期:2026-10-27
研究背景:
动脉粥样硬化是以脂蛋白异常、慢性炎症和脂质沉积为核心的心脑血管基础病变,也是全球死亡和致残的重要原因。其发生涉及脂蛋白氧化、内皮功能障碍、炎症与活性氧(ROS)放大,并促使巨噬细胞吞噬氧化低密度脂蛋白形成泡沫细胞;泡沫细胞胆固醇过载后衰老死亡,推动斑块坏死核心形成。因此,治疗需兼顾抗炎与凋亡细胞清除,避免非特异性抗炎损害先天防御和斑块修复。斑块CD47异常上调经SIRPα–SHP-1通路抑制巨噬细胞胞葬作用,是坏死核心扩大和炎症持续的关键。鉴于ROS参与氧化低密度脂蛋白生成、内皮损伤及巨噬细胞极化与浸润,多酶模拟抗氧化纳米酶具有治疗潜力,但单纯清除ROS疗效有限,且现有体系存在比表面积低、协同不足和靶向性欠佳等问题。受天然金属酶启发,金属配位驱动的氨基酸自组装为构建类蛋白纳米酶提供新思路,但兼具高孔隙、高催化活性与精准病理靶向,并能协同恢复胞葬作用的多孔金属纳米酶仍待突破。
针对上述问题,上海交通大学吴蓉、上海大学陈雨、陈良团队成功开发了一种以铜离子和甘氨酸在碱性条件下金属配位自组装构建多孔铜基金属-氨基酸纳米酶MAzyme,使其兼具抗氧化酶模拟活性与载药能力,并负载SHP1抑制剂SHP1i后再以巨噬细胞膜camouflage形成MMAzyme-S:膜包被赋予其炎症趋化/斑块靶向能力,铜基MAzyme清除ROS、减轻斑块氧化应激与炎症并利于内皮修复,SHP1i则阻断损伤细胞与吞噬细胞间CD47-SIRPα抗吞噬信号,特异性恢复受损的胞葬作用、加速凋亡碎片清除与炎症消退;二者协同进一步上调ABCA1/ABCG1促进逆向胆固醇转运和胆固醇外流,减少泡沫细胞形成并维持稳态。该文章于2026年7月23日以《Bioinspired porous metal-amino acid nanozymes enable multi-pathway treatment of atherosclerosis through anti-oxidation and pro-efferocytosis》为题发表于《Nature Communications》(DOI:10.1038/s41467-026-75509-4)。
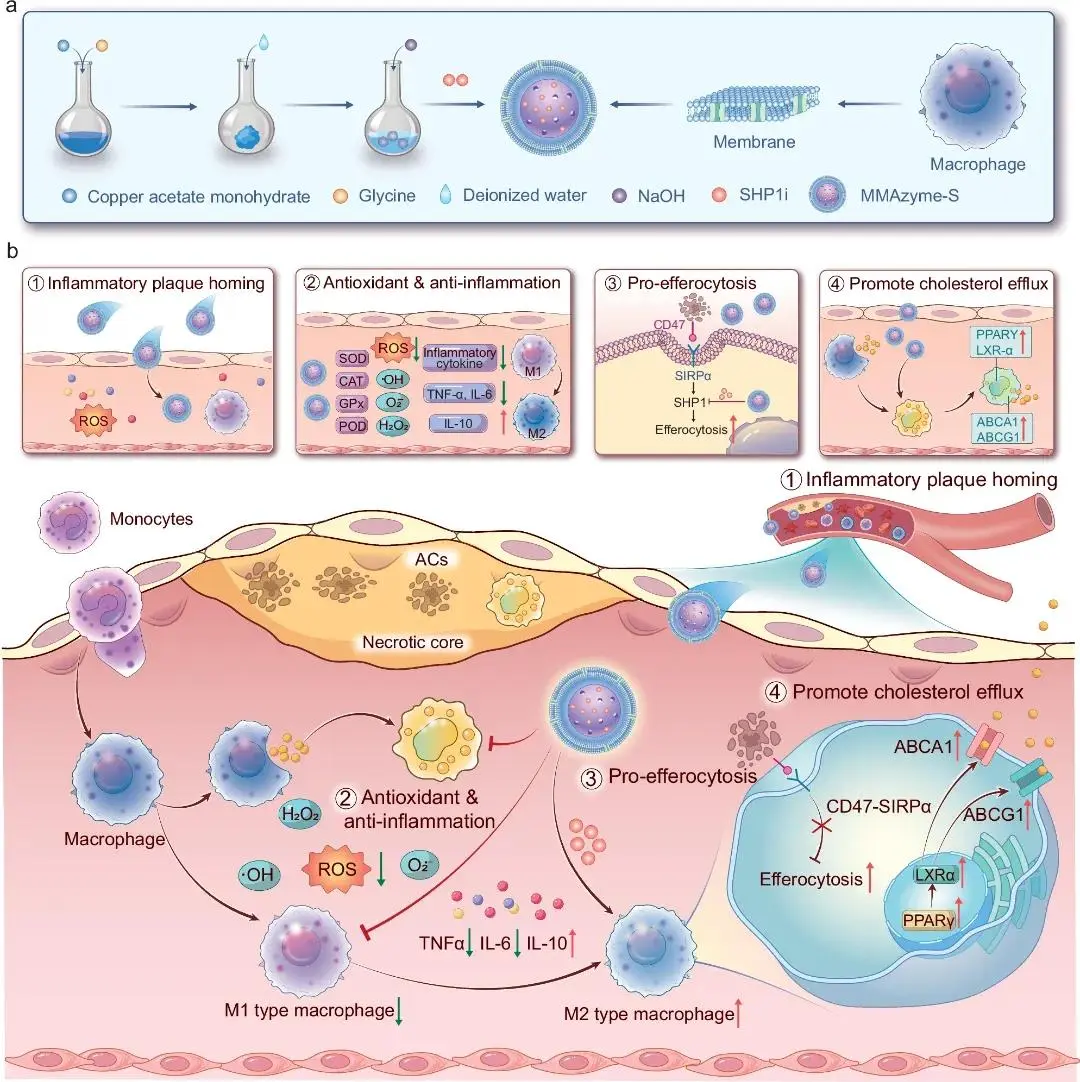
示意图. 仿生MMAzyme-S的制备流程及其多通路协同治疗动脉粥样硬化的机制示意图。(a) MMAzyme-S的合成流程,包括MAzyme制备、SHP1抑制剂装载以及MM包覆;(b) 靶向发病机制的MMAzyme-S纳米平台对动脉粥样硬化进展的多通路干预示意图。
(1)MMAzyme-S的合成与表征
以甘氨酸为配位分子、二价铜离子为无机前驱体构建Gly-Cu(II)配合物,经¹H NMR和高分辨质谱验证结构与纯度后,在碱性、室温条件下水解,通过甘氨酸稳定的小纳米晶自发堆积形成介孔MAzyme(图1a)。TEM显示其为小纳米晶堆积的球形颗粒,平均粒径131.76 nm(图1b);HRTEM证实亚晶结构(图1c),Cu、O、N、C元素均匀分布(图1d, e)。分子动力学模拟显示,无NaOH时分子分散,20 NaOH时适度聚集,高NaOH条件下形成稳定纳米簇,分子间氢键在30 ns内增加并趋于稳定(图1f, g)。FTIR在3567、3295、919和706 cm⁻¹处检出配位诱导的—OH振动,1602和1386 cm⁻¹对应COO⁻不对称/对称振动,证实氨基酸配位作用(图1h)。XPS显示Cu 2p3/2和Cu 2p1/2峰分别位于934.7和954.5 eV,943.1 eV卫星峰证实Cu²⁺存在(图1i);XRD鉴定其为正交氢氧化铜,各衍射峰分别对应(020)、(021)、(002)、(111)、(130)、(132)和(152)晶面(图1j)。氮吸附–脱附曲线为IV型,BET比表面积为101.8 m²/g,孔径约10.3 nm(图1k)。进一步采用超声法包覆RAW 264.7巨噬细胞膜构建MMAzyme;TEM显示约9 nm单层膜包覆(图1l),Western blot检出CD36、CD47和CCR2(图1m),Zeta电位由正转负(图1n)。水动力直径由178.5 nm增至211.4 nm,PDI分别为0.105和0.076(图1o),表明仿生MMAzyme-S纳米平台构建成功。
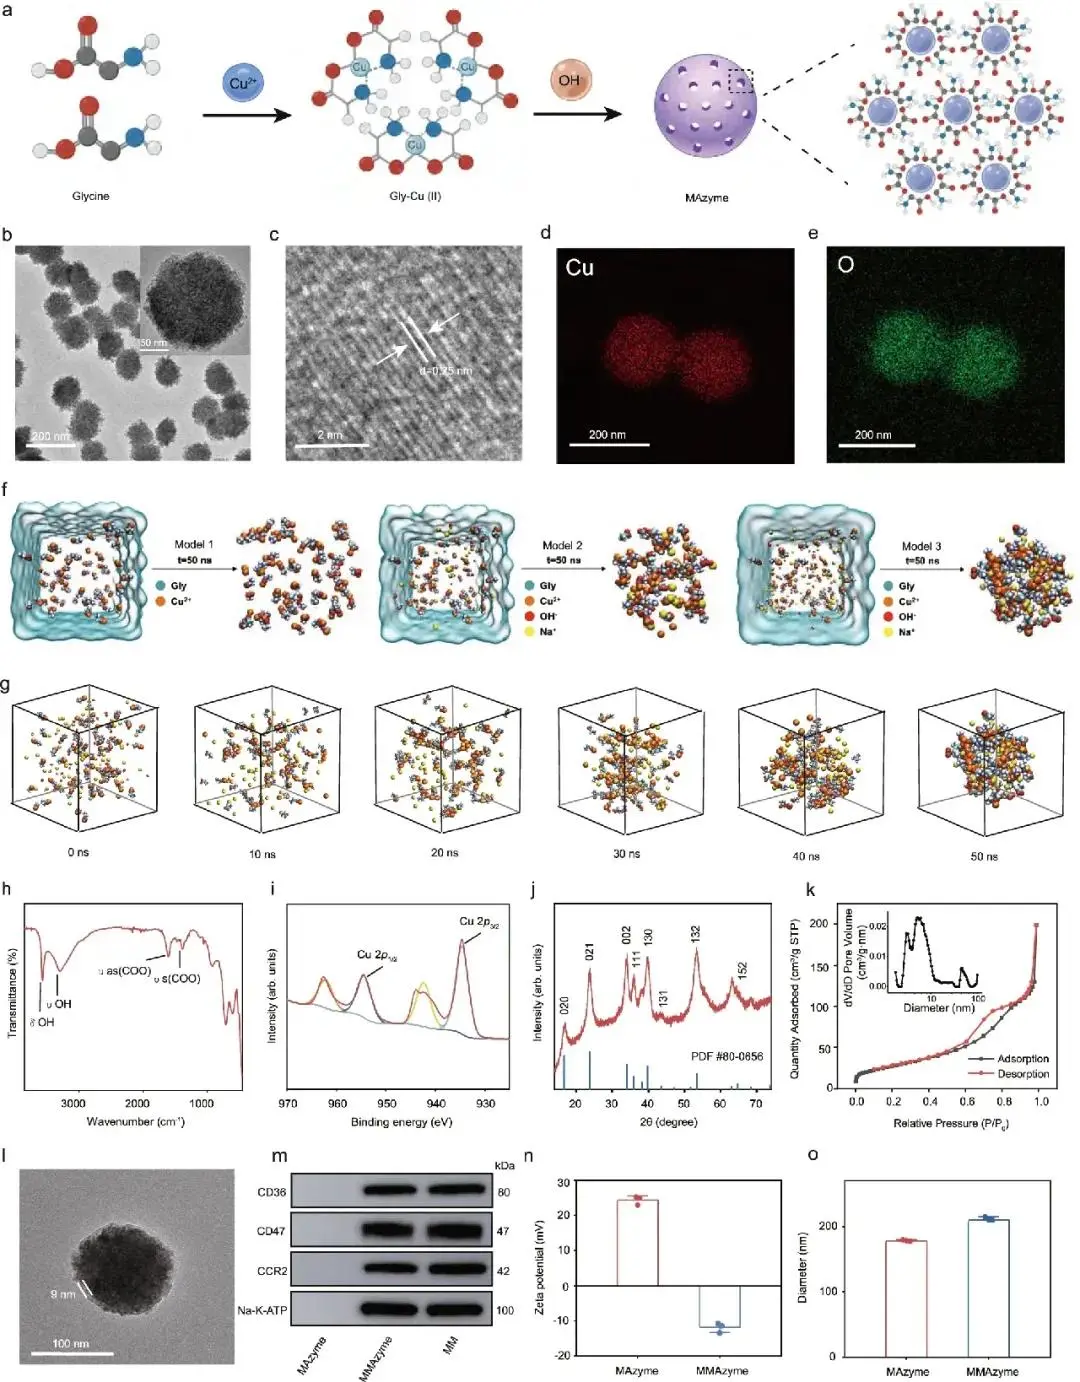
图1. MAzyme 与 MMAzyme-S 的合成及表征。(a) MAzyme的合成过程与结构示意图;(b) MAzyme的透射电镜(TEM)照片及放大图;(c) MAzyme的高分辨透射电镜(HRTEM)照片;(d、e) MAzyme的元素mapping;(f) 模拟过程中,不同模型下复合体系初始态与终态的结构变化;(g) 通过均方位移(MSD)分析得到的MAzyme超分子结构自聚集过程的时间演变规律;(h) MAzyme的傅里叶变换红外光谱(FTIR);(i) MAzyme的高分辨Cu 2p X射线光电子能谱(XPS)结果;(j) MAzyme的X射线衍射(XRD)谱图;(k) MAzyme的氮气吸附-脱附等温线,以及基于非局域密度泛函理论(NLDFT)计算得到的相应孔径分布曲线(插图);(l) 仿生MMAzyme的透射电镜照片,可见MAzyme表面包覆有细胞膜层;(m) 蛋白质免疫印迹(Western blotting)检测MAzyme、MMAzyme及MM上CD36、CD47和CCR2特征蛋白条带;(n) 采用动态光散射(DLS)测定MAzyme与MMAzyme的Zeta电位;(o) 动态光散射测得的MAzyme与MMAzyme粒径。
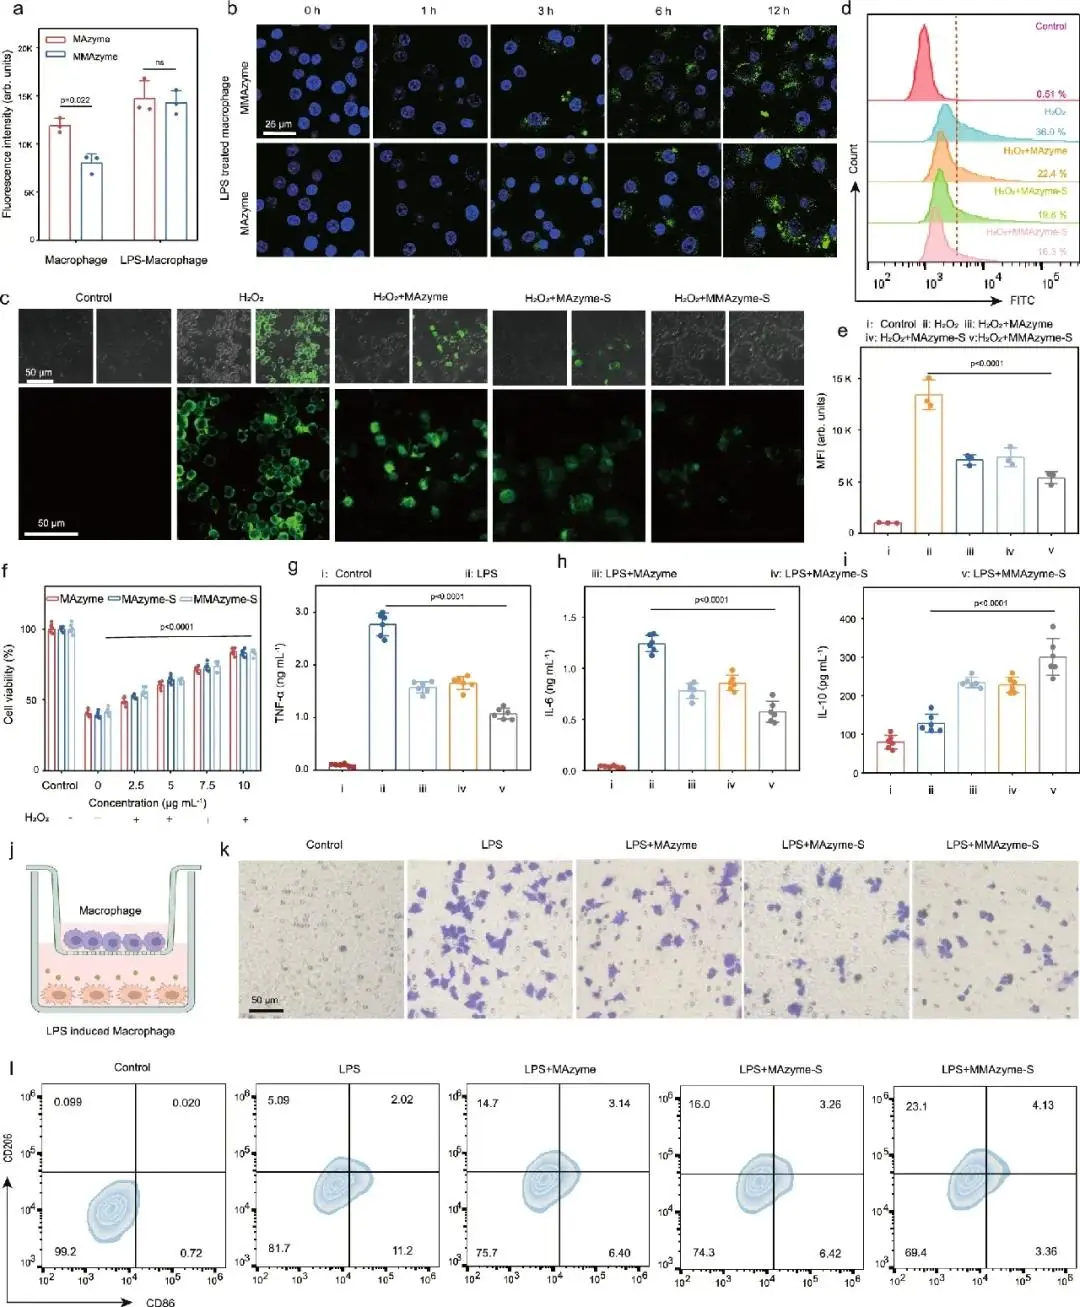
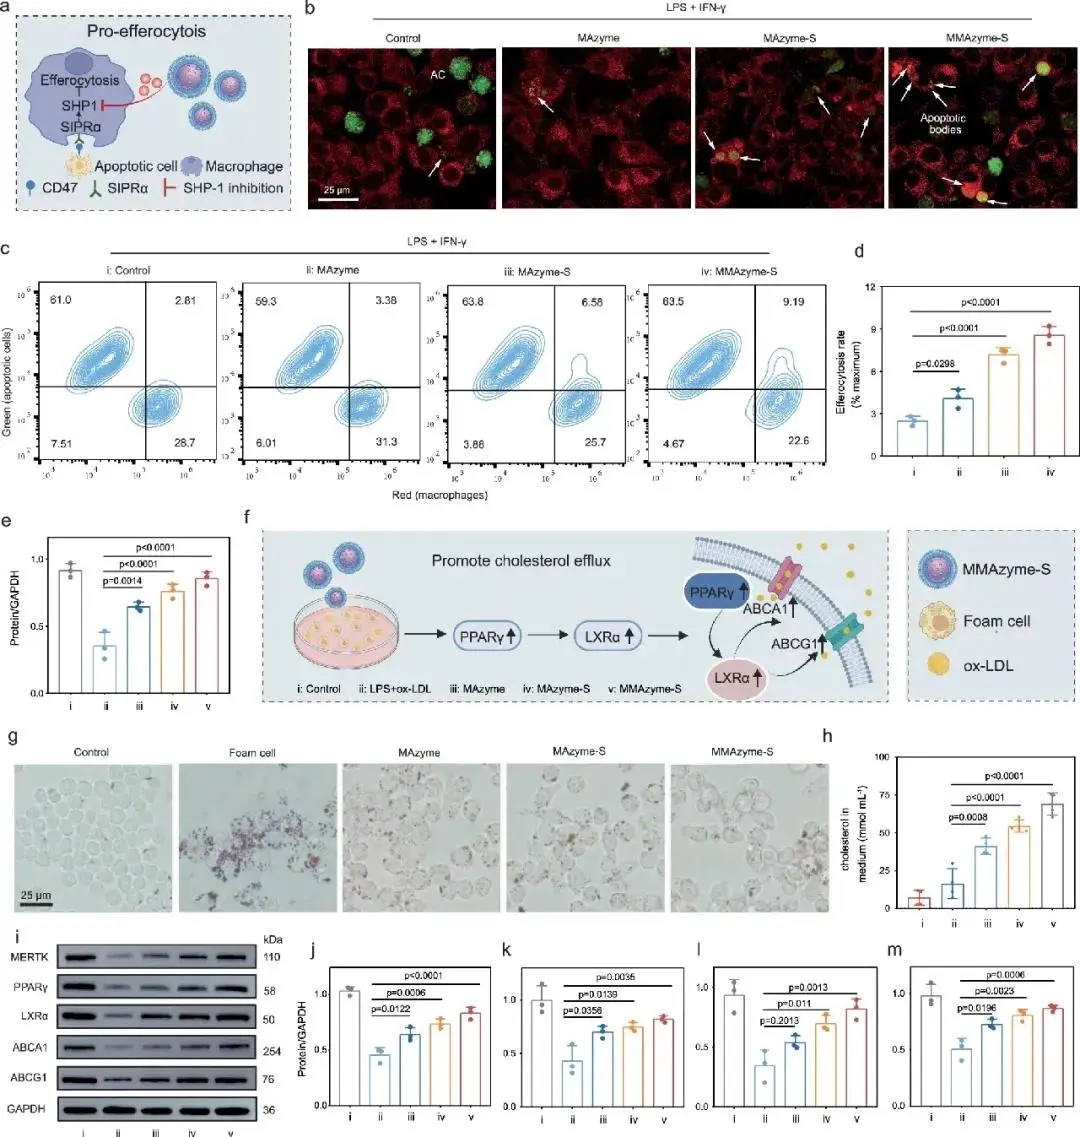
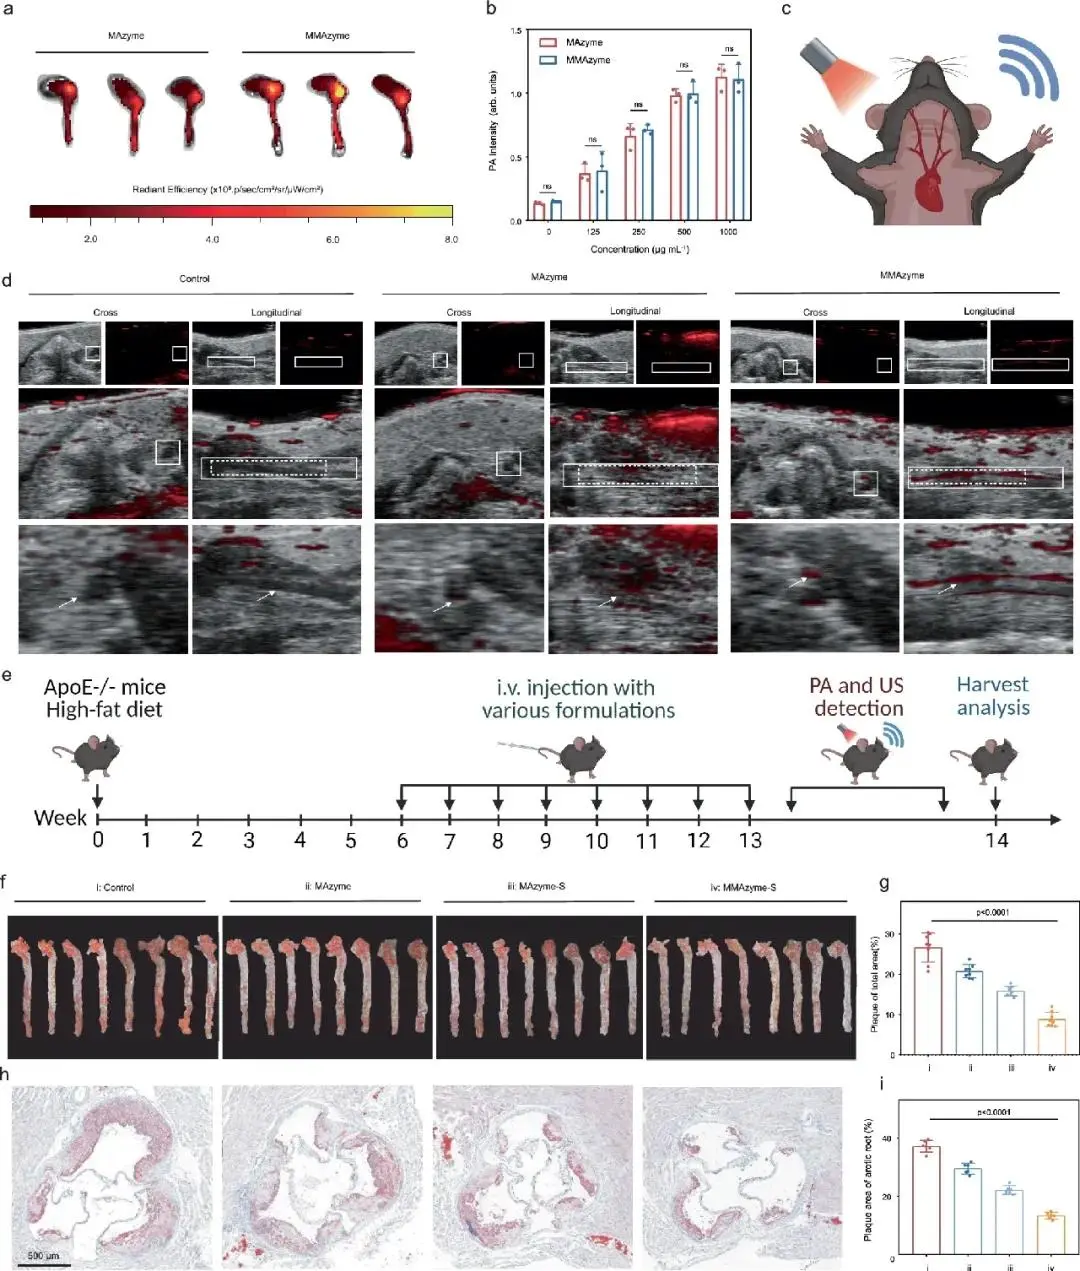
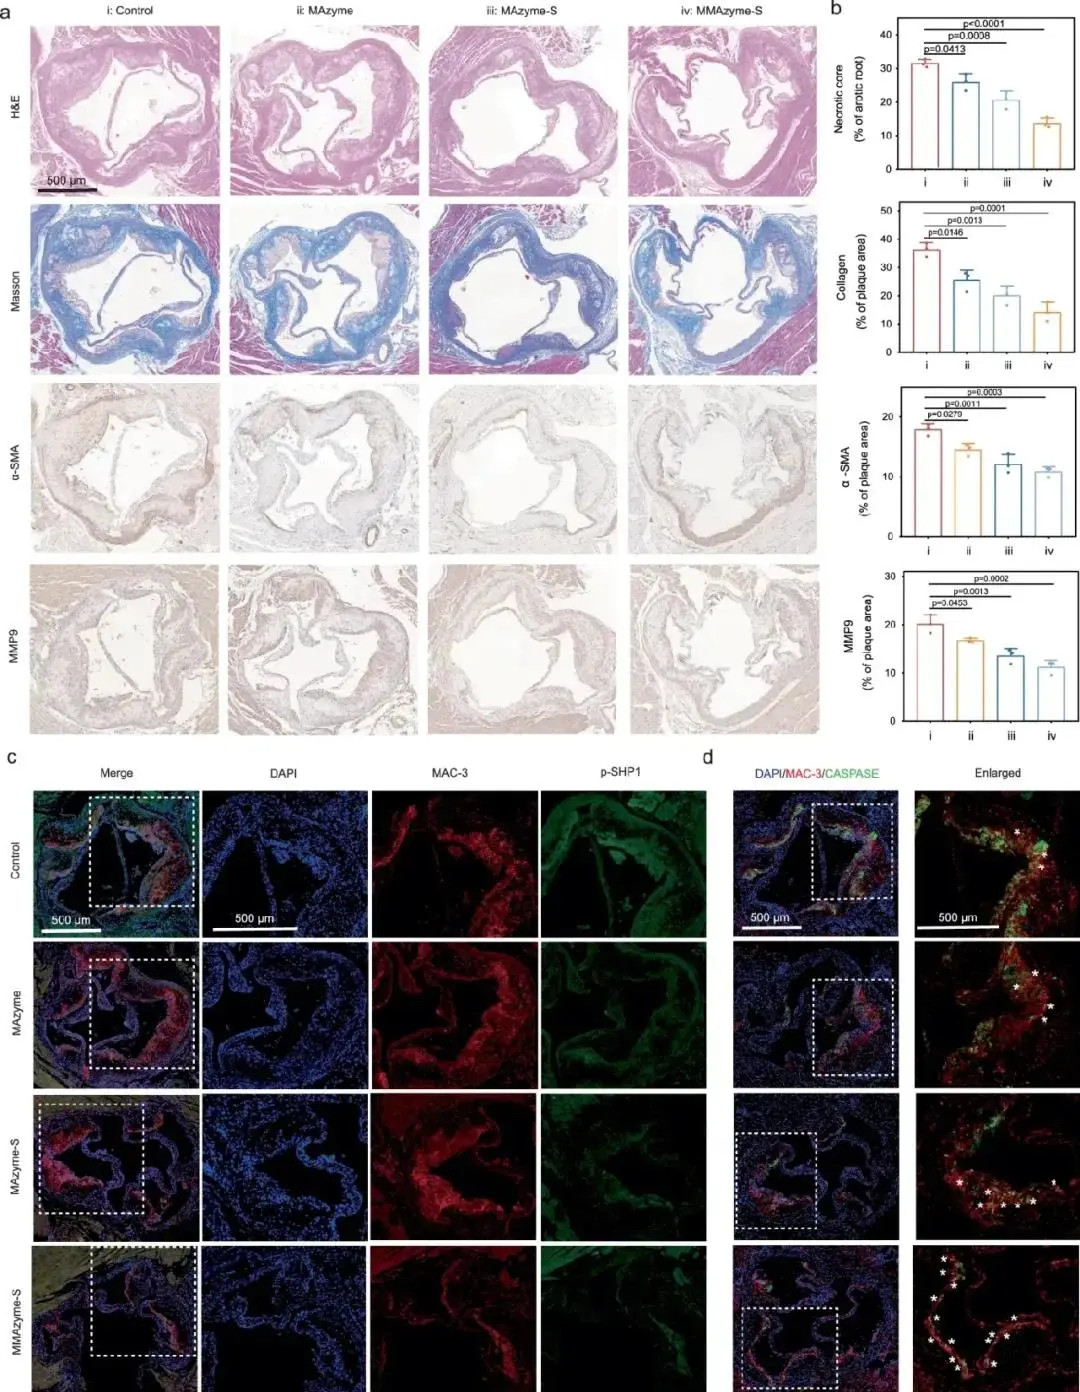
(2)MAzyme的类酶活性 按图2a所示路径评估MAzyme的多酶模拟抗氧化能力。ESR结果显示,加入MAzyme后,DMPO捕获的•OH和O₂•⁻特征信号呈浓度依赖性下降(图2b, c)。MAzyme与MMAzyme均呈剂量依赖性清除O₂•⁻,40 μg/mL时清除率分别约为86.06%和74.59%(图2d);MAzyme的SOD样活性IC₅₀为26.97 μg/mL,比活性为1853.9 U/mg,高于多种已报道SOD样纳米酶(图2e)。H₂O₂在240 nm处的吸收下降及O₂生成量增加证实其CAT样活性,且均呈浓度/时间依赖性(图2f, g);Michaelis–Menten与Lineweaver–Burk拟合得到Vmax=12.11 mg·L⁻¹·min⁻¹、Km=182.38 mM(图2h, i)。TMB显色实验显示,652 nm处吸收随MAzyme浓度升高而增加,证实其POD样活性(图2j);GR偶联实验中,MAzyme组NADPH在340 nm处的吸收持续低于对照,证实其GPx样活性(图2k)。DFT比较了Cu(OH)₂与MAzyme的电子结构和反应路径(图2l)。CAT路径中,MAzyme对H₂O₂的吸附能为−0.86 eV,低于Cu(OH)₂的−0.39 eV,其H₂O脱附决速步能垒由0.75 eV降至0.53 eV(图2m)。SOD路径中,MAzyme决速步能垒为1.25 eV,低于Cu(OH)₂的1.69 eV(图2n)。MAzyme的Cu d带中心为−1.977 eV,较Cu(OH)₂的−2.153 eV更接近费米能级(图2o);ELF显示其Cu–O键电子离域增强(图2p, q)。上述结果表明,甘氨酸配位通过促进电子转移并降低决速步能垒,提高MAzyme的SOD样和CAT样活性。 图2. MAzyme的多类酶模拟活性。(a) MAzyme多重类酶活性的原理示意图;(b、c) 不同浓度MAzyme清除羟基自由基(・OH)与超氧阴离子自由基(O2•−)的电子自旋共振(ESR)谱图;(d) MAzyme与MMAzyme的类超氧化物歧化酶(SOD)活性;(e) MAzyme与已报道纳米酶的SOD比活性对比;(f、g) MAzyme的类过氧化氢酶(CAT)活性;(f) 为含有MAzyme的过氧化氢溶液中溶解氧生成量;(g) 通过240 nm处吸光度变化反映MAzyme催化的过氧化氢分解过程;(h、i) MAzyme类CAT活性的米-曼(Michaelis-Menten)动力学分析与Lineweaver-Burk双倒数拟合曲线);(j) MAzyme的类过氧化物酶(POD)活性;(k) MAzyme的类谷胱甘肽过氧化物酶(GPx)活性;(l) 氢氧化铜与MAzyme的原子结构;(m、n) MAzyme和氢氧化铜分别表现类CAT活性、类SOD活性的反应路径自由能图;(o) MAzyme与氢氧化铜的Cu 3d分波态密度(PDOS)计算结果;(p) 氢氧化铜、q MAzyme的电子局域函数(ELF)图。 (3)MMAzyme-S的体外抗氧化与抗炎能力 摄取实验显示,正常巨噬细胞对MAzyme和MMAzyme的12 h内吞率分别为68.07%和52.33%,表明膜包覆可降低外周巨噬细胞清除;在LPS诱导的炎症巨噬细胞中,两者12 h摄取率分别为83.5%和84.17%,但MMAzyme在6 h的摄取率已达65.13%,高于MAzyme的47.2%(图3a)。CLSM观察到炎症巨噬细胞对FITC标记MAzyme和MMAzyme的摄取(图3b)。DCFH-DA检测显示,在H₂O₂和LPS诱导的氧化应激模型中,MAzyme、MAzyme-S和MMAzyme-S均降低胞内ROS荧光,其中MMAzyme-S组信号最低(图3c);流式细胞术定量结果进一步证实其ROS清除率最高(图3d, e)。2.5–10 μg/mL的三种纳米酶均可减轻H₂O₂诱导的RAW 264.7细胞损伤,10 μg/mL MMAzyme-S使细胞活力由41.69%升至83.51%(图3f)。LPS刺激后,巨噬细胞TNF-α和IL-6分泌增加、IL-10降低;MMAzyme-S显著抑制IL-6和TNF-α分泌(图3g, h),并上调IL-10(图3i)。Transwell实验显示,下室LPS刺激促进上室未激活巨噬细胞跨膜迁移(图3j);MAzyme和MAzyme-S均减少迁移细胞数,MMAzyme-S组迁移细胞最少(图3k)。此外,MAzyme和MAzyme-S均可降低M1型巨噬细胞比例并提高M2型比例(图3l)。 图3. MMAzyme-S的细胞摄取、活性氧清除及炎症抑制性能。(a) 流式细胞术(FCM)分析巨噬细胞及脂多糖(LPS)处理巨噬细胞在12 h内对MAzyme和MMAzyme的内化情况;(b) 脂多糖处理的RAW 264.7细胞分别与MAzyme、MMAzyme共孵育0、1、3、6、12 h后的代表性激光共聚焦扫描显微镜(CLSM)图像;(c) 经过氧化氢处理的RAW 264.7细胞,分别与MAzyme、MAzyme-S、MMAzyme-S(10 μg・mL-1)孵育后的DCFH-DA染色图;(d) 流式细胞术检测、(e) 对应的定量分析:过氧化氢处理RAW 264.7细胞,经MAzyme、MAzyme-S、MMAzyme-S(10 μg・mL-1)孵育后胞内活性氧(ROS)水平;(f) RAW 264.7细胞在过氧化氢(400 μM)作用下,加入不加入不同浓度MAzyme、MAzyme-S、MMAzyme-S共处理后的细胞活力;(g、h、i) 脂多糖刺激RAW 264.7细胞,经MAzyme、MAzyme-S、MMAzyme-S(10 μg・mL-1)孵育后细胞上清中肿瘤坏死因子-α(TNF-α)、白介素-6(IL-6)、白介素-10(IL-10)的表达水平;(j) 体外评价不同处理后 RAW 264.7 细胞趋化能力的Transwell实验示意图;(k) 下室加入不同样品共孵育后,发生迁移的RAW 264.7细胞代表性显微照片;(l) 不同处理后巨噬细胞极化的流式细胞术分析。 (4)MMAzyme-S介导的体外促胞葬作用及胆固醇外流增强效应 在LPS/IFN-γ诱导的促炎巨噬细胞模型中,MMAzyme-S预处理可显著增强炎症条件下对标准凋亡细胞(ACs)的吞噬。针对TNF-α和ox-LDL预处理上调CD47所形成的抗吞噬ACs(图4a),对照巨噬细胞吞噬可忽略,而MAzyme-S和MMAzyme-S预处理组出现整个细胞engulfment及多个凋亡小体/细胞碎片内化(图4b);FCM显示抗吞噬条件下吞噬指数仅2.49%,MMAzyme-S处理后升至8.56%(图4c, d),并伴随SHP1磷酸化显著降低。与anti-CD47抗体相比,MMAzyme-S的ACs清除程度最高(图41)。机制上,MMAzyme-S组Mertk表达显著上调(图4e, i)。在脂质稳态方面,ox-LDL联合LPS诱导明显细胞内脂质积聚和泡沫细胞形成,各处理均可减轻泡沫化,且MMAzyme-S组脂滴最少(图4g);上清总胆固醇检测显示MMAzyme-S组胆固醇含量升高,提示泡沫细胞胆固醇外流增强(图4h)。Western blot显示MMAzyme-S处理后PPARγ、LXRα、ABCA1和ABCG1表达升高(图4i, j–m),说明其通过PPARγ-LXRα-ABCA1/ABCG1轴促进胆固醇外流并恢复胆固醇稳态。 图4. MMAzyme-S实现的体外促胞葬作用与胆固醇外流增强效应。(a) MMAzyme-S促胞葬作用原理示意图;(b) 激光共聚焦扫描显微镜(CLSM)图像,经不同样品预处理的促炎表型巨噬细胞对过表达CD47的凋亡细胞(ACs)的吞噬情况;(c) 流式细胞术(FCM)结果、(d) 对应的定量分析:不同样品预处理的促炎表型巨噬细胞对过表达CD47凋亡细胞的胞葬作用;(e) 不同处理条件下巨噬细胞Mertk蛋白的蛋白质免疫印迹(Western blotting)定量结果;(f) MMAzyme-S促进胆固醇外流的机制示意图;(g) 不同处理条件下巨噬细胞诱导形成泡沫细胞的光学显微镜图像;(h) 不同处理组泡沫细胞上清液中的胆固醇含量;(i) 蛋白质免疫印迹检测不同处理巨噬细胞中Mertk、PPARγ、LXRα、ABCA1以及ABCG1蛋白表达水平;(j-m) 分别为不同处理巨噬细胞中PPARγ、LXRα、ABCA1、ABCG1蛋白的免疫印迹定量结果。 (5)MMAzyme-S的体内生物相容性与斑块靶向能力 健康C57小鼠静脉注射saline或MMAzyme-S(10 mg kg-1)后,于第7、14、28天评估。靶向与成像方面,Cy5.5标记后离体荧光显示,MMAzyme在斑块负荷主动脉根部和胸主动脉的蓄积高于MAzyme(图5a),其他主要器官分布无显著差异。ICG负载赋予纳米酶PA成像能力,800 nm处PA信号呈浓度依赖,巨噬细胞膜包被未明显影响成像性能(图5b);体内颈动脉检测中,MMAzyme因炎症归巢产生高于周围正常组织的强对比信号,而MAzyme仅见弱信号被动蓄积(图5c, d),定量信号约为MAzyme的2.1倍。治疗实验中,ApoE⁻/⁻小鼠经5周高脂饮食建模后随机分为saline、MAzyme、MAzyme-S和MMAzyme-S四组,每周静脉给药并继续高脂饮食8周(图5e)。颈动脉超声/PA融合成像并对斑块动脉壁PA信号定量显示,MMAzyme-S组信号最弱,提示斑块负荷降低。主动脉整体ORO染色显示,saline组斑块面积最大,MAzyme和MAzyme-S中度减小,MMAzyme-S组病变最轻(图5f);平均斑块面积由saline组26.59%降至MMAzyme-S组8.84%(图5g)。主动脉根部ORO冰冻切片同样显示MMAzyme-S对斑块抑制最明显(图5h, i)。 图5. MMAzyme-S在斑块部位的富集及其抑制动脉粥样硬化斑块的体内治疗效果。(a) 动脉粥样硬化小鼠心脏与主动脉组织中MAzyme、MMAzyme富集情况的离体荧光成像图;(b) 负载吲哚菁绿(ICG)的MAzyme与MMAzyme在不同浓度下的体外光声(PA)信号强度;(c) 光声成像操作流程示意图;(d) 动脉粥样硬化小鼠颈动脉的体内超声-光声融合成像,包含横断面与纵切面视图;(e) 动脉粥样硬化小鼠的治疗方案示意图;(f) 不同处理后主动脉大体油红O(ORO)染色代表性照片;(g) 对应的定量统计结果;(h) 主动脉根部油红O冷冻切片代表性染色图像;(i) 对应的定量统计结果。 (6)MMAzyme-S的体内协同抗动脉粥样硬化作用 主动脉根部H&E染色显示,saline组存在明显富脂质坏死核心,MMAzyme-S组坏死核心显著缩小,由31.50%降至13.74%(图6a, b);Masson和α-SMA染色显示MMAzyme-S抑制血管平滑肌细胞增殖并使胶原形成减少约22.09%(图6a, b);免疫荧光显示MMAzyme-S抑制斑块内MMP-9表达(图6a, b)。3个月高脂饮食模型主动脉根部ROS信号强,斑块内SHP1磷酸化在MMAzyme-S组显著受抑(图6c)。以cleaved caspase-3标记凋亡细胞、Mac-3/cleaved caspase-3共染识别巨噬细胞吞噬凋亡细胞,结果显示MMAzyme-S组游离凋亡体/巨噬细胞相关凋亡细胞比值显著降低(图6d)。 图6. MMAzyme-S的抗动脉粥样硬化效果及其潜在作用机制。(a) 主动脉根部切片的苏木素-伊红(H&E)染色、马松三色(Masson’s trichrome)染色代表性图像;以及α‑平滑肌肌动蛋白(α‑SMA)、基质金属蛋白酶-9(MMP-9)抗体的免疫组化染色图像;(b) 主动脉根部坏死核心占比、动脉粥样硬化斑块内胶原蛋白、α‑SMA以及MMP-9表达水平的定量分析结果;(c) 主动脉根部切片Mac-3抗体与磷酸化SHP-1抗体共染的代表性免疫荧光图像,评价不同处理后斑块内SHP-1的活性;(d) 主动脉根部切片Mac-3与活化caspase-3 (cleaved caspase-3)共染的代表性免疫荧光图像,评估不同处理后斑块内巨噬细胞对凋亡细胞(ACs)的胞葬作用。 本研究构建了一种由铜-甘氨酸金属配位自组装形成的多孔抗氧化纳米酶MAzyme、负载促胞葬抑制剂SHP1i并经巨噬细胞膜包被而成的病因为靶向纳米平台MMAzyme-S;相比仅再激活斑块吞噬的SWNT-SHP1i和仅作载体、依赖膜吸附细胞因子的MM-SHP1i脂质体,该平台同时覆盖抗氧化、抗炎、恢复胞葬和促进胆固醇外流。结果显示,MAzyme具有接近天然SOD的多酶样抗氧化活性,MMAzyme-S经炎症归巢在斑块富集,可清除ROS、抑制TNF-α/IL-6并促进M2极化,阻断CD47-SIRPα-SHP1抗吞噬信号以增强凋亡细胞清除并上调Mertk,进而通过PPARγ-LXRα-ABCA1/ABCG1轴促进逆向胆固醇转运、抑制泡沫细胞形成;体内实验证实其可减小斑块面积和坏死核心、降低MMP-9并增加纤维帽厚度,且停药4周后仍维持较低斑块负荷和较高稳定性,疗效优于MAzyme和MAzyme-S。研究同时指出,斑块内释放铜离子的精确定量及其安全治疗浓度范围仍需系统评价;总体而言,MMAzyme-S通过协同调控氧化应激、炎症微环境、受损胞葬和异常胆固醇外流,实现了对动脉粥样硬化进展的多环节干预。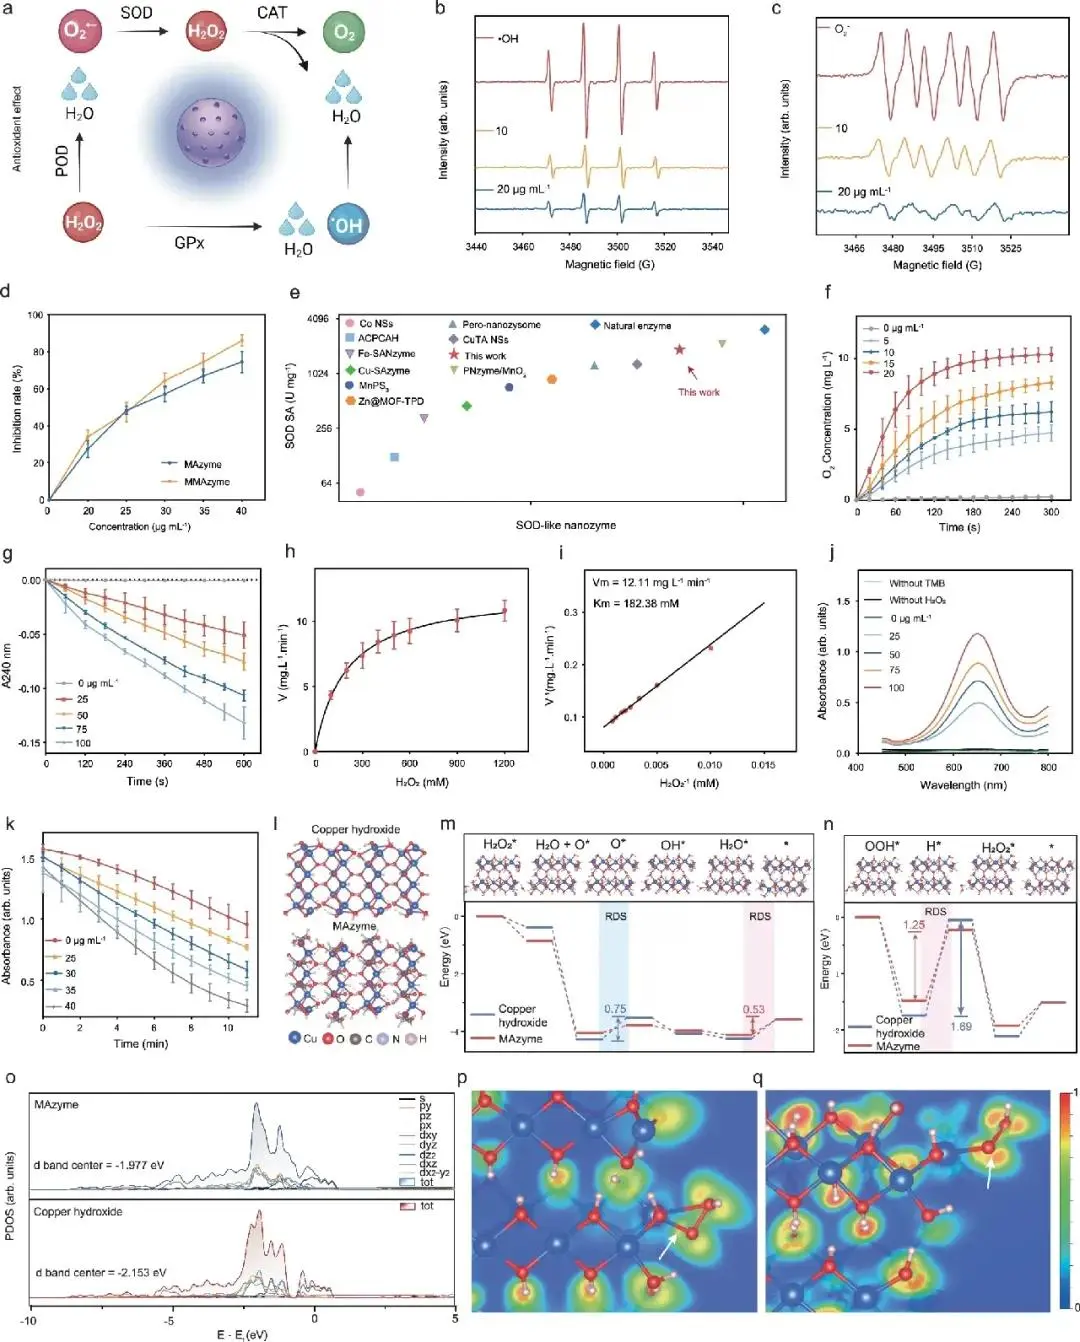
上一页:找不到相关信息
|
创赛生物 提供高品质的医疗产品和服务 |
联系我们 |
自研材料 |
扫码关注
关注公众号 扫码加客服
|