IF:18.1《NC》复旦大学蒋晨/孙涛团队:ROS自催化纳米平台干扰星形胶质细胞-肿瘤互作并增强胶质母细胞瘤治疗
专栏:学术前沿
发布日期:2026-10-23
研究背景:
胶质母细胞瘤(GBM)是最具侵袭性的原发性脑肿瘤,即使接受手术切除、放疗和替莫唑胺(TMZ)化疗,患者中位总生存期仍不足15个月。关键难题之一在于其独特的代谢适应性与肿瘤微环境(TME)互作:GBM的线粒体呼吸高于正常脑细胞,并劫持邻近生态位细胞(尤其是星形胶质细胞)以维持高代谢状态。近年研究发现,星形胶质细胞可通过肿瘤微管(MTs)向GBM转移线粒体;该过程受TGF-β/SMAD/血小板反应蛋白-1(TSP-1)通路调控,可扩充肿瘤细胞线粒体池、重编程代谢并增强对线粒体抑制剂的抵抗。TCGA数据证实,TSP-1高表达的GBM患者总生存更差,星形胶质细胞富集的肿瘤区域线粒体含量高于瘤周组织。这一"细胞间线粒体转移"是传统治疗尚未覆盖的代谢脆弱点,提示需要同时干预肿瘤内在线粒体活性与外在线粒体补给的双重策略。
针对上述问题,复旦大学蒋晨、孙涛团队设计了一种脱氢抗坏血酸(DHA)功能化、ROS响应、二茂铁(Fc)集成的聚合物纳米平台GS@DFP,共载S-Gboxin与Galunisertib,同时靶向GBM线粒体与星形胶质细胞-癌细胞互作中的线粒体转移。DHA通过GBM高表达的Glut1介导跨血脑屏障(BBB)转运与肿瘤蓄积;苯硼酸酯(Pb)侧链在高ROS环境下氧化水解,触发两种药物同步释放;Fc催化内源性H2O2经Fenton反应生成羟基自由基(•OH),放大氧化应激。S-Gboxin抑制线粒体复合物V并耗竭ATP,Galunisertib下调TGF-β/SMAD驱动的TSP-1表达、抑制肿瘤微管形成,从而减少星形胶质细胞向GBM的线粒体转移;TGF-β抑制同时重塑免疫抑制性TME。该文章于2026年9月10日以《ROS-autocatalytic nanoplatform interfering astrocyte-cancer crosstalk and enhancing glioblastoma therapy》为题发表于《Nature Communications》(DOI:10.1038/s41467-026-77395-2)。
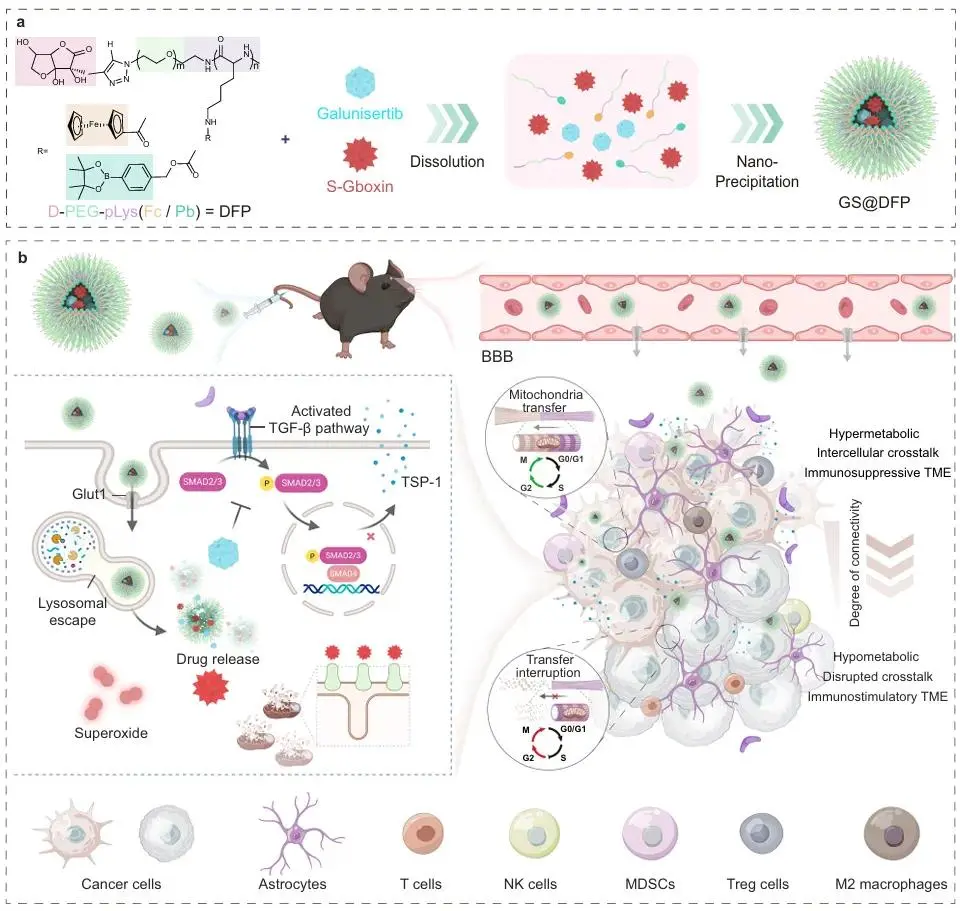
图1. GS@DFP抑制线粒体并调控GBM中的线粒体转移。(a)GS@DFP的结构与构建。(b)经DHA介导靶向跨越BBB后,GS@DFP产生超氧物种并对ROS做出响应触发释药;S-Gboxin结合ATP合酶破坏线粒体功能,Galunisertib抑制SMAD2/3磷酸化,进而下调TSP-1表达、抑制肿瘤微管形成、减少线粒体转移,并同步激活抗肿瘤免疫。
(1)GBM中星形胶质细胞向肿瘤细胞的线粒体转移
TCGA数据库分析显示,TGF-β/SMAD/TSP-1信号通路相关基因在GBM组织中显著上调(图2a-b)。Western blot结果进一步证实,TSP-1在人GBM样本及小鼠肿瘤组织中的表达高于正常组织(图2c-d)。体外共培养实验结合场发射扫描电镜观察发现,GBM细胞与星形胶质细胞之间形成长度约50-80 μm的肿瘤微管(MTs),Mito-Tracker标记实验显示星形胶质细胞来源的线粒体可转移至肿瘤细胞内(图2e-g)。在原位GBM模型及患者来源肿瘤组织中,肿瘤区域线粒体及GAP43信号增强,且反应性星形胶质细胞富集区域表现出更高的线粒体含量,证实体内存在星形胶质细胞向肿瘤细胞的线粒体转移(图2g-i)。进一步采用TGF-β通路抑制剂Galunisertib处理后,GL261细胞中pSMAD2/3和TSP-1表达降低,并伴随MT形成减少(图2k-m)。共培养实验显示,直接细胞接触是线粒体转移发生的必要条件,而Galunisertib预处理可降低星形胶质细胞向GBM细胞的线粒体转移水平,并减少G2/M期细胞比例(图2n-p)。上述结果表明,抑制TGF-β/SMAD/TSP-1信号轴可阻断星形胶质细胞介导的线粒体转移,并抑制GBM细胞恶性增殖。
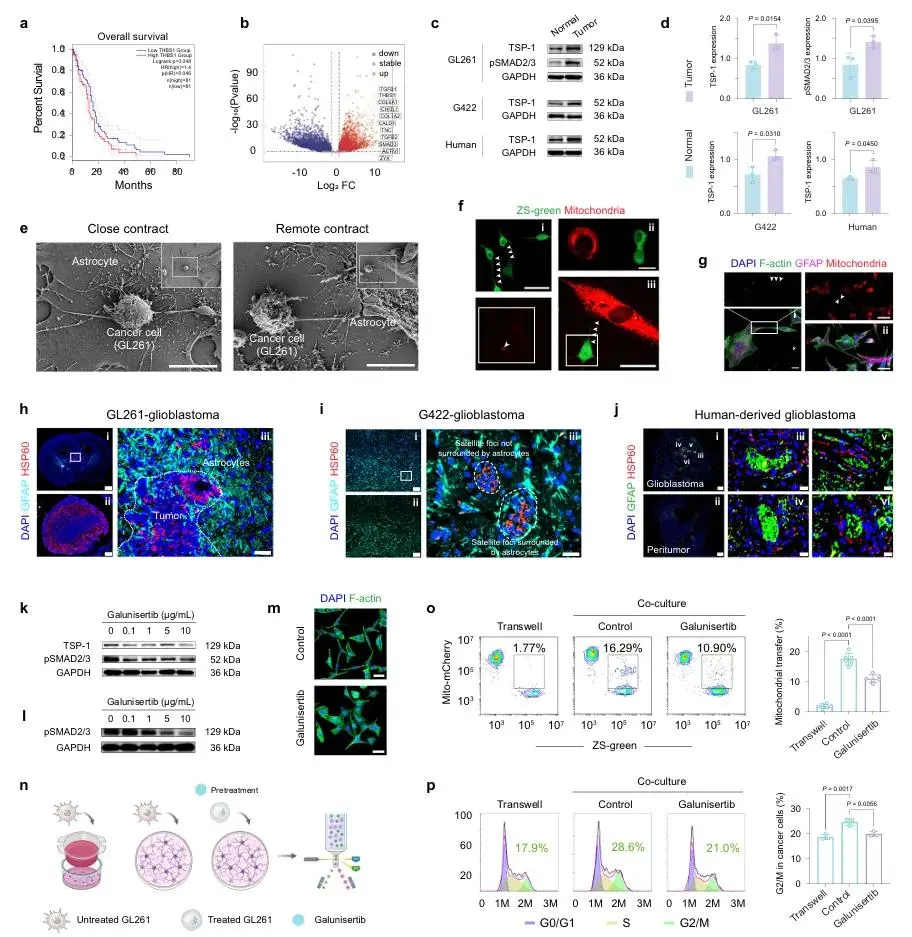
图2. GBM中星形胶质细胞-肿瘤细胞线粒体转移及其调控机制。(a)TSP-1表达与GBM患者总体生存相关性分析;(b)GBM中肿瘤微管(MTs)相关基因差异分析;(c,d)GL261/G422荷瘤小鼠及临床GBM样本中pSMAD2/3和TSP-1蛋白表达及定量分析;(e)肿瘤细胞与星形胶质细胞间MTs连接的FESEM图像;(f,g)星形胶质细胞向GBM细胞线粒体转移的荧光成像;(h-j)小鼠GBM模型及临床样本中肿瘤区域线粒体分布分析;(k,l)Galunisertib处理后GL261和G422细胞中TSP-1及pSMAD2/3表达变化;(m)Galunisertib对G422细胞MT形成的影响;(n)细胞共培养体系示意图;(o,p)Galunisertib对线粒体转移及细胞周期分布的影响。
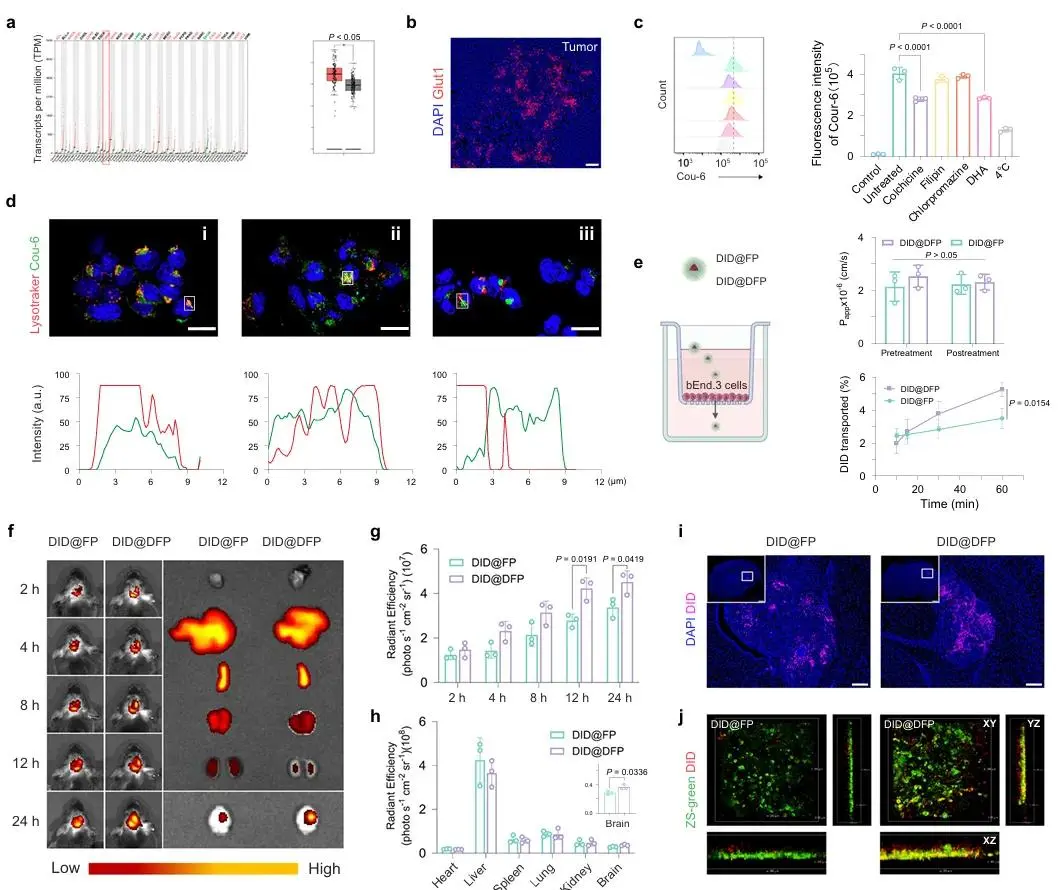
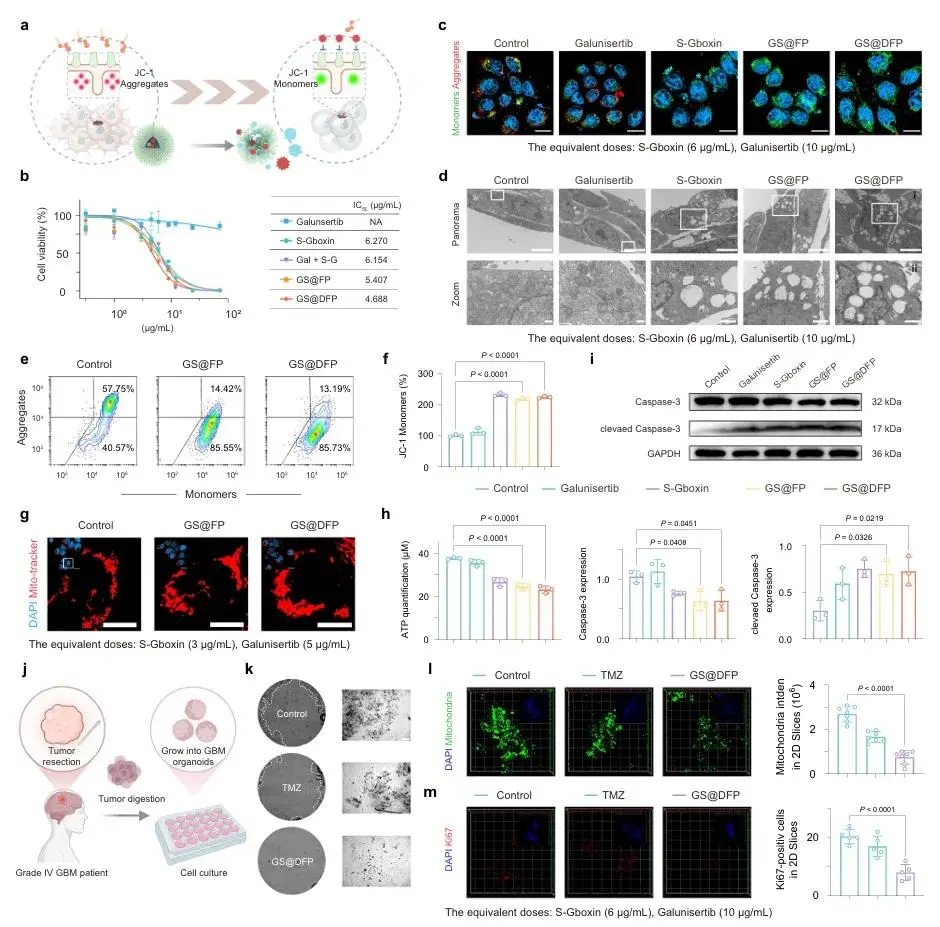
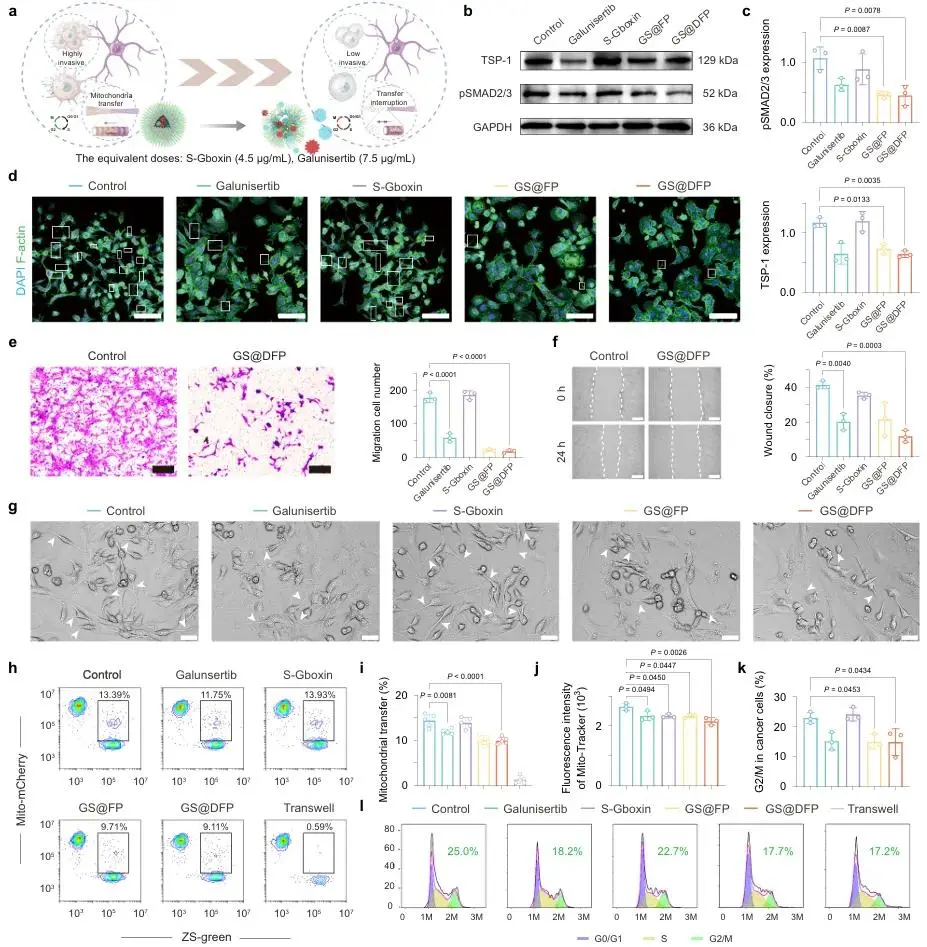
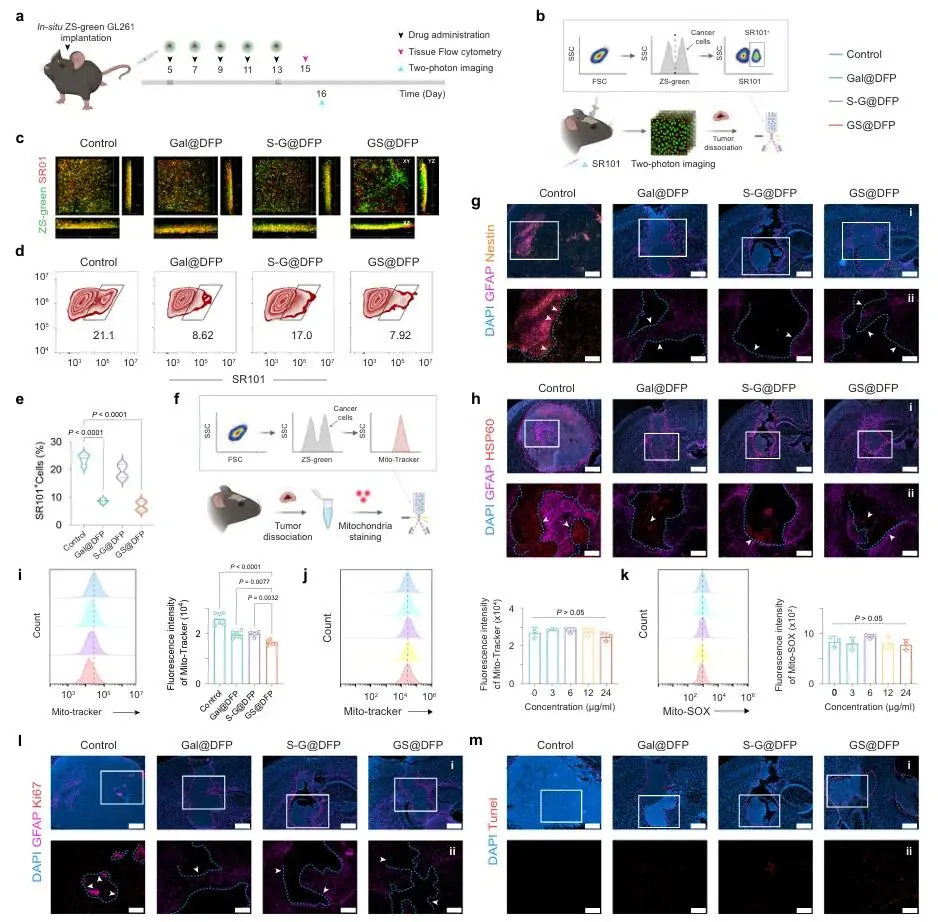
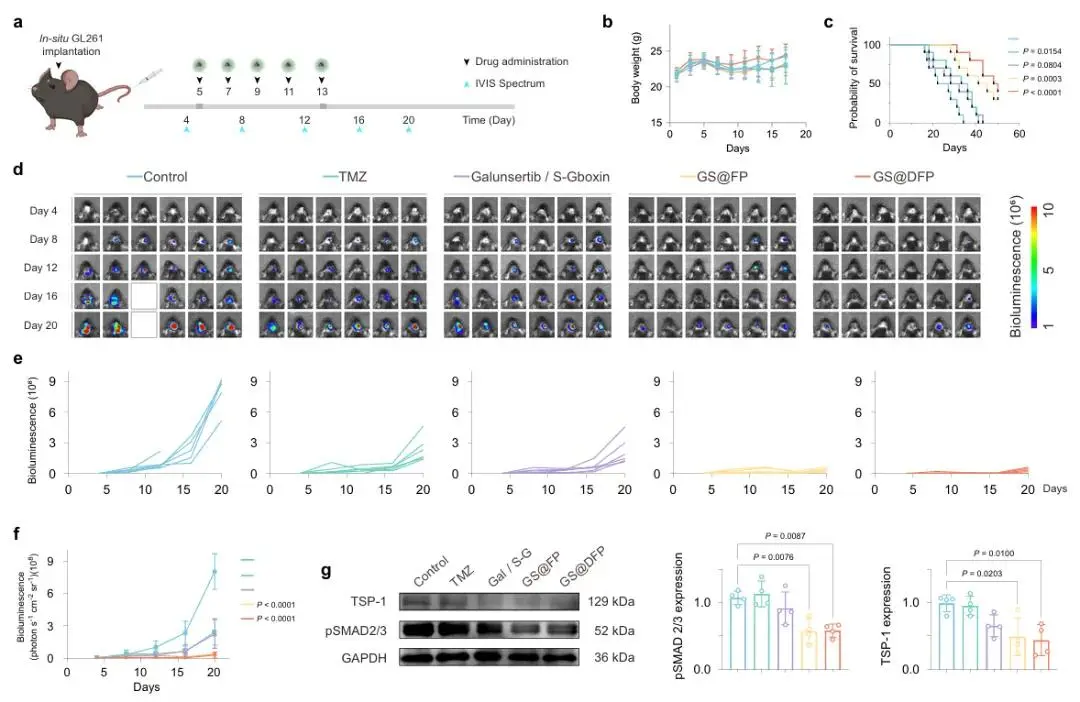
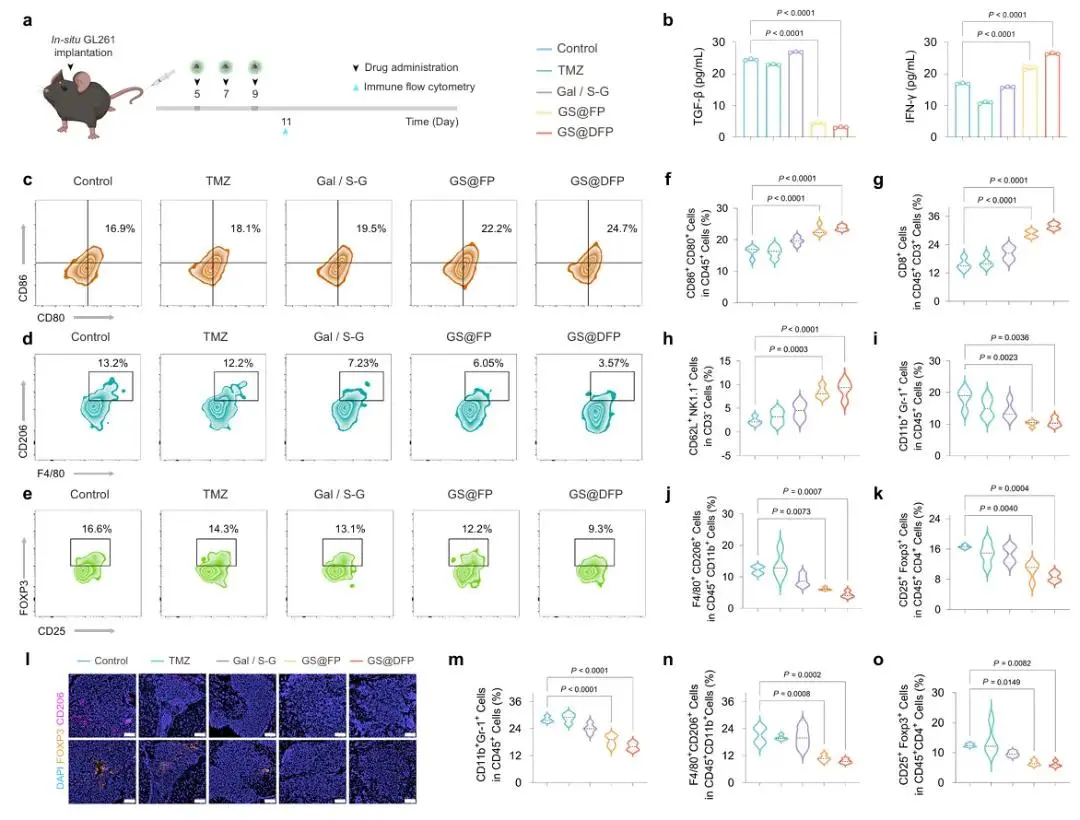
(2)GS@DFP的制备与表征 以PEG-poly(L-lysine)为聚合物骨架,通过引入苯硼酸酯(Pb)和二茂铁(Fc)功能基团,并连接脱氢抗坏血酸(DHA)靶向基团,构建双药递送纳米平台GS@DFP。通过优化聚合物比例及DHA修饰比例,确定最佳制备条件,其中2:1比例空白纳米颗粒可诱导GL261细胞氧化应激并促进线粒体超氧阴离子积累(图3a,b)。进一步优化DHA修饰比例后,制备得到GS@DFP纳米颗粒,其平均粒径约50 nm(图3c)。ROS响应性分析显示,H2O2刺激可诱导Pb基团氧化水解,促进HBA生成及双药释放(图3d,e,h)。TEM结果显示,H2O2处理后GS@DFP形貌及粒径发生明显变化,FRET分析进一步证实ROS诱导的Pb键断裂改变了聚合物组分间空间关系(图3f,g)。此外,DCFH-DA和DHE探针检测显示,GS@DFP处理可显著提高GL261细胞内ROS及线粒体超氧阴离子水平(图3i,j)。结果表明,GS@DFP具有ROS响应性药物释放及氧化应激诱导功能。 图3. GS@DFP的构建与ROS响应性能表征。(a)不同空白纳米颗粒诱导GL261细胞氧化应激水平分析;(b)空白纳米颗粒诱导线粒体超氧阴离子积累;(c)GS@FP和GS@DFP的粒径表征;(d)GS@DFP的ROS响应性裂解释放机制示意图;(e,h)不同条件下GS@DFP中HBA、Galunisertib和S-Gboxin的释放行为;(f)H2O2诱导GS@DFP组分亲疏水平衡变化的FRET分析;(g)不同条件处理后GS@DFP的TEM图像;(i,j)不同处理后GL261细胞内ROS水平的荧光成像及流式定量分析。 (3)GS@DFP的细胞内行为及脑靶向能力 泛癌分析显示,GBM具有较高的葡萄糖摄取特征,并伴随Glut1高表达(图4a)。GL261肿瘤组织免疫荧光染色进一步验证了肿瘤区域Glut1的高表达(图4b)。内吞机制分析表明,DHA修饰纳米颗粒主要通过巨胞饮作用促进GL261细胞摄取(图4c),且Cou-6@DFP可实现有效溶酶体逃逸(图4d)。在体外血脑屏障(BBB)模型中,DHA修饰显著提高纳米颗粒跨越bEnd.3细胞屏障的能力(图4e)。静脉注射后,小动物活体荧光成像、离体器官荧光定量及肿瘤切片分析显示,DID@DFP在GBM模型中表现出更高的肿瘤富集水平(图4f-i)。进一步利用双光子荧光显微镜观察原位GBM模型发现,DID@DFP在肿瘤区域具有更强的荧光信号积累,证实DHA修饰有助于纳米颗粒的脑肿瘤靶向递送(图4j)。 图4. GS@DFP的细胞内行为及脑靶向能力。(a)GEPIA数据库分析GBM组织中Glut1表达水平;(b)GBM组织中Glut1表达的免疫荧光染色;(c)不同处理后GL261细胞对Cou-6@DFP摄取情况及流式定量分析;(d)Cou-6@DFP在GL261细胞中的溶酶体逃逸行为;(e)体外血脑屏障模型构建及纳米颗粒跨屏障能力分析;(f-i)静脉注射后DID@FP和DID@DFP在脑肿瘤中的荧光分布、肿瘤富集及离体器官荧光定量分析;(j)双光子荧光显微镜观察DID@DFP在原位GBM肿瘤区域的积累。 (4)GS@DFP破坏线粒体功能并抑制GBM细胞增殖 S-Gboxin可靶向线粒体内膜ATP合酶,降低线粒体膜电位并抑制氧化磷酸化,从而诱导肿瘤细胞死亡(图5a)。CCK-8检测显示,Galunisertib单独处理对细胞活力影响较小,而GS@DFP表现出最低IC50值(图5b)。JC-1染色和流式分析显示,GS@FP和GS@DFP处理后红色荧光向绿色荧光转变,提示线粒体膜电位降低(图5c,e,f)。Bio-TEM观察发现,S-Gboxin、GS@FP和GS@DFP处理后线粒体嵴结构受损,并伴随线粒体降解现象(图5d)。Mito-Tracker Red染色显示,GS@FP和GS@DFP处理导致线粒体结构破坏(图5g),同时细胞内ATP水平显著下降(图5h)。进一步检测凋亡相关蛋白显示,Caspase-3发生剪切形成cleaved Caspase-3,提示线粒体损伤诱导凋亡发生(图5i,j)。此外,基于原代IV级GBM患者组织构建的类器官模型显示,GS@DFP处理可显著抑制类器官形成并促进坏死,而TMZ处理效果较弱(图5k,l)。Mito-Tracker Green染色显示GS@DFP有效降低类器官内线粒体信号,同时Ki67染色结果表明其显著抑制类器官增殖能力(图5m,n)。上述结果表明,GS@DFP能够破坏GBM细胞及类器官的线粒体功能,并抑制肿瘤细胞增殖。 图5. GS@DFP破坏线粒体功能并抑制GBM细胞增殖。(a)GS@DFP诱导线粒体损伤及膜电位变化示意图;(b)不同处理后GL261细胞活力及IC50分析;(c,e,f)JC-1染色及流式分析检测线粒体膜电位变化;(d,g)不同处理后GL261细胞线粒体形态变化;(h)细胞内ATP水平检测;(i)凋亡相关蛋白Caspase-3和cleaved Caspase-3表达分析;(j)患者来源GBM类器官模型构建示意图;(k)TMZ和GS@DFP处理后GBM类器官形态变化;(l)GBM类器官线粒体染色及定量分析;(m)GBM类器官Ki67染色及阳性细胞定量分析。 (5)GS@DFP抑制线粒体转移并阻断GBM恶性增殖 肿瘤微管(MTs)作为GBM细胞间通讯及星形胶质细胞向肿瘤细胞线粒体转移的重要通道,其形成受到TGF-β/SMAD/TSP-1信号调控(图6a)。Western blot结果显示,与Galunisertib类似,GS@FP和GS@DFP处理均可降低GL261细胞中MT相关蛋白pSMAD2/3和TSP-1的表达水平(图6b,c)。共聚焦显微镜观察显示,GS@FP和GS@DFP显著减少MT结构形成(图6d),并进一步降低GL261细胞的侵袭能力和迁移能力,包括Transwell侵袭和划痕修复能力下降(图6e,f)。在肿瘤细胞与星形胶质细胞共培养体系中,GS@FP和GS@DFP处理后细胞间MT连接数量减少(图6g)。进一步利用Mito-mCherry标记的星形胶质细胞与ZS-Green标记的GL261细胞共培养,发现含Galunisertib的处理组中双阳性细胞比例降低,表明星形胶质细胞来源的线粒体转移受到抑制(图6h,i)。细胞内线粒体含量分析显示,S-Gboxin主要造成肿瘤细胞自身线粒体损伤,而Galunisertib通过抑制MT形成减少外源性线粒体输入,GS@DFP联合递送两种药物后表现出最低的细胞内线粒体含量(图6j)。此外,细胞周期分析显示,GS@FP和GS@DFP处理可降低G2/M期细胞比例,提示线粒体转移抑制与肿瘤增殖能力下降相关(图6k,l)。 图6. GS@DFP抑制肿瘤微管形成及线粒体转移。(a)GS@DFP调控肿瘤微管形成、线粒体转移及肿瘤增殖的示意图;(b,c)不同处理后GL261细胞中pSMAD2/3和TSP-1蛋白表达及定量分析;(d)不同处理后GL261细胞肿瘤微管形成情况;(e,f)不同处理后GL261细胞侵袭和迁移能力分析;(g)肿瘤细胞与星形胶质细胞间微管连接的荧光图像;(h,i)流式检测及定量分析星形胶质细胞来源线粒体转移至GL261细胞的比例;(j)共培养条件下GL261细胞线粒体含量分析;(k,l)共培养条件下GL261细胞周期分布及定量分析。 (6)GS@DFP在体内抑制线粒体转移并破坏GBM线粒体功能 在原位ZS-green GL261荷瘤小鼠模型中,通过SR101标记星形胶质细胞并结合双光子显微镜观察肿瘤微管(MTs)连接情况,结果显示Gal@DFP和GS@DFP处理后,肿瘤细胞与星形胶质细胞间SR101与肿瘤细胞信号共定位降低,SR101+肿瘤细胞比例减少,提示肿瘤MT形成受到抑制(图7a-e)。进一步检测肿瘤组织中MT相关蛋白Nestin表达发现,Gal@DFP和GS@DFP均可降低Nestin水平,验证其对体内MT形成及细胞间连接的抑制作用(图7g)。随后采用Mito-Tracker Red染色结合流式分析检测肿瘤细胞线粒体含量,结果显示Gal@DFP通过抑制线粒体转移减少外源性线粒体输入,S-G@DFP通过破坏肿瘤细胞自身线粒体降低线粒体含量,而GS@DFP联合治疗组表现出最低的肿瘤细胞线粒体水平(图7f)。组织成像进一步显示,Gal@DFP处理后肿瘤周围星形胶质细胞区域线粒体信号减少,而GS@DFP处理后肿瘤核心及周边区域线粒体信号均明显降低(图7h)。体外实验表明,Galunisertib单独处理对肿瘤细胞线粒体数量和质量无直接影响,说明其主要通过抑制MT介导的线粒体转移发挥作用(图7j,k)。此外,Ki67染色显示Gal@DFP和S-G@DFP均可降低肿瘤增殖信号,而GS@DFP联合治疗组抑制效果最明显;同时,各治疗组均表现出增强的凋亡水平(图7l,m)。上述结果表明,GS@DFP通过同时抑制星形胶质细胞来源的线粒体转移和破坏肿瘤细胞自身线粒体功能,降低GBM恶性增殖能力。 图7. GS@DFP在体内抑制线粒体转移并破坏肿瘤线粒体功能。(a)ZS-Green GL261原位GBM模型构建及治疗流程示意图;(b)SR101标记星形胶质细胞及双光子显微镜观察肿瘤细胞摄取示意图;(c-e)双光子成像及流式分析检测SR101⁺肿瘤细胞比例;(f)肿瘤组织线粒体含量检测流程示意图;(g,h)肿瘤组织中Nestin和HSP60荧光染色分析;(i)不同治疗组肿瘤细胞线粒体含量的流式检测及定量分析;(j,k)不同浓度Galunisertib处理后GL261细胞线粒体数量及功能分析;(l,m)肿瘤组织Ki67增殖信号及凋亡相关信号检测。 (7)GS@DFP抑制GBM肿瘤生长并延长生存期 在GL261-Luci荷瘤小鼠模型中评价GS@DFP的体内抗肿瘤效果,并以临床常用化疗药物TMZ作为对照(图8a)。治疗过程中各组小鼠体重无明显变化表明GS@DFP在提高GBM治疗效果的同时具有良好的体内安全性(图8b)。生存分析显示,游离药物联合治疗对小鼠生存期改善有限,TMZ仅轻度延长生存时间,而GS@FP和GS@DFP组均有部分小鼠存活超过50天,其中GS@DFP组表现出最长的中位生存期(图8c)。活体生物发光成像显示,GS@FP和GS@DFP均可显著抑制肿瘤生长,且治疗效果优于游离药物联合组和TMZ组(图8d,e,f)。 图8. GS@DFP的体内抗肿瘤效果评价。(a)GL261-Luc荷瘤小鼠模型构建及治疗流程示意图;(b)不同治疗组小鼠体重变化;(c)不同治疗组小鼠生存曲线;(d-f)不同治疗组小鼠活体生物发光成像及肿瘤信号定量分析;(g)不同治疗组肿瘤组织中pSMAD2/3和TSP-1蛋白表达及定量分析。 (8)GS@DFP激活GBM免疫微环境 在GL261-Luc荷瘤小鼠模型中评价GS@DFP对肿瘤免疫微环境的调控作用(图9a)。结果显示,GS@FP和GS@DFP处理均降低肿瘤组织中pSMAD2/3和TSP-1表达水平,并减少免疫抑制性因子TGF-β分泌,同时提高免疫激活因子IFN-γ水平(图8g、图9b)。流式分析显示,GS@FP和GS@DFP促进颈部引流淋巴结中成熟DC比例增加(图9c,f)。此外,在肿瘤及脾脏组织中,GS@FP和GS@DFP均增强细胞毒性CD8⁺ T细胞和NK细胞活性(图9g,h),同时降低MDSCs浸润(图9i,m)。进一步分析显示,GS@FP和GS@DFP抑制TGF-β诱导的巨噬细胞M2极化及初始T细胞向Treg分化,表现为F4/80+CD206+ M2型巨噬细胞和CD25+Foxp3+ Treg细胞比例降低(图9d,e,j,k,n,o)。免疫荧光染色进一步证实肿瘤组织中CD206和FOXP3表达下降(图9l)。上述结果表明,GS@DFP通过抑制TGF-β相关免疫抑制信号,促进免疫细胞激活并改善GBM免疫微环境。 图9. GS@DFP调控GBM肿瘤免疫微环境。(a)GL261-Luc荷瘤小鼠模型构建、治疗流程及免疫分析示意图;(b)治疗后GBM组织中TGF-β和IFN-γ水平检测;(c-e)流式分析肿瘤组织中成熟DC、M2型巨噬细胞及Treg细胞比例;(f)颈部引流淋巴结中成熟DC比例分析;(g-k)流式检测GBM组织中免疫效应细胞(T细胞、NK细胞)及免疫抑制细胞(MDSCs、M2型巨噬细胞、Treg细胞)的浸润情况;(l)肿瘤组织中FOXP3和CD206免疫荧光染色分析;(m-o)流式定量分析GBM组织中MDSCs、M2型巨噬细胞及Treg细胞比例。 本研究构建了一种葡萄糖类似物靶向、活性氧(ROS)响应的双药递送纳米平台GS@DFP,通过靶向干预胶质母细胞瘤(GBM)异常线粒体代谢及肿瘤细胞与微环境间的代谢互作,为GBM治疗提供了新的纳米医学策略。该纳米系统可有效穿越血脑屏障并在肿瘤区域富集,在ROS刺激下响应性释放S-Gboxin与Galunisertib两种药物,实现"一抑内源、二断外援"的协同治疗:S-Gboxin抑制肿瘤细胞线粒体ATP合酶,直接破坏线粒体功能、阻断氧化磷酸化;Galunisertib则通过抑制TGF-β/SMAD/TSP-1信号轴,阻断星形胶质细胞与肿瘤细胞间肿瘤微管(MTs)的形成及线粒体转移,削弱肿瘤对周围神经胶质细胞代谢支持的依赖。与此同时,GS@DFP还能通过调控TGF-β相关免疫抑制信号,促进树突状细胞成熟,增强CD8⁺T细胞和NK细胞活性,并减少MDSCs、M2型巨噬细胞和Treg细胞的浸润,显著改善GBM的免疫微环境。体内外实验结果证实,GS@DFP能够同时摧毁肿瘤内源性线粒体功能并切断星形胶质细胞来源的线粒体补给,有效抑制GBM细胞增殖与肿瘤进展,延长荷瘤小鼠生存期,且具有良好的生物安全性。该研究揭示了靶向肿瘤细胞与周围微环境之间代谢通讯的新机制与新策略,为克服GBM的高度代谢适应性和治疗耐受性提供了重要的理论依据与潜在的治疗方案。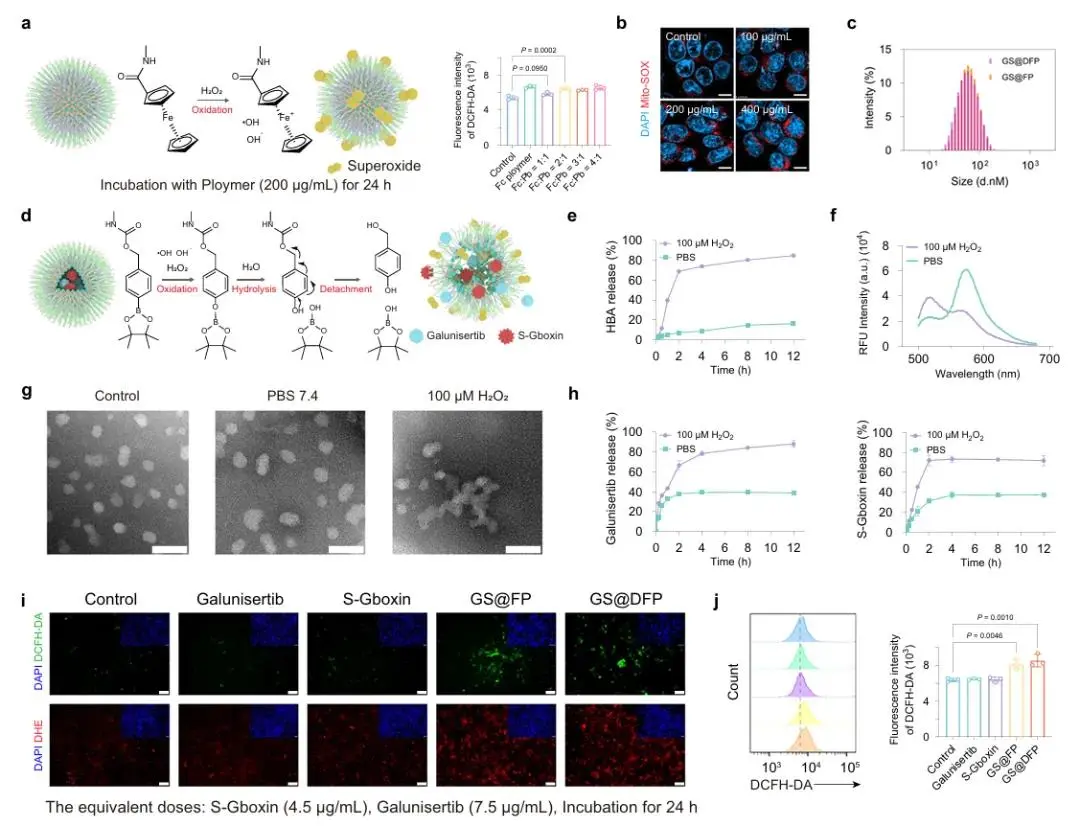
|
创赛生物 提供高品质的医疗产品和服务 |
联系我们 |
自研材料 |
扫码关注
关注公众号 扫码加客服
|